LE SOSTANZE PECTICHE
LE SOSTANZE PECTICHE – Colloidi di natura glucidica o polisaccardidi o “protettori” da ELABORAZIONE E STABILIZZAZIONE DEI VINI di GILDO DAL CIN integrato con articoli da riviste del settore
I polisaccaridi che derivano dall’uva sono il risultato dell’idrolisi e della solubilizzazione di una parte delle sostanze pectiche contenute nella parete delle cellule della buccia e della polpa. La loro terminologia può generare confusione, in quanto l’uso di certi termini (pectine, gomme, sostanze pectiche neutre, sostanze pectiche acide) variano da autore a autore Secondo le più recenti conoscenze distinguiamo le pectine e le gomme secondo i seguenti criteri:
1. le pectine sono costituite quasi esclusivamente da catene di acido galatturonico (acido α-D-galattopiranosidico) parzialmente esterificate dal metanolo. Il grado di esterificazione di queste molecole polimeriche è elevato (da 70 a 80%). I termini acido poligalatturonico, omogalatturonano sono sinonimi utilizzati per denominare tali catene. I legami osidici degli omogalatturonani sono del tipo α-(1,4).
Questi composti sono facilmente separati dagli altri polisaccaridi solubili totali del mosto dell’uva, per saponificazione, con formazione di acido pectico che, per addizione di cloruro di calcio, precipita sotto forma di pectato la cui idrolisi dà praticamente solo acido galatturonico (diverse centinaia di mg/L).
Essi sono assenti dai mosti di uve ammuffite in quanto sono idrolizzati dalle endopoligalatturonasi della Botrytis cinerea, (Dubourdieu, 1978); nel caso delle vendemmie sane scompaiono ugualmente sotto l’azione degli enzimi pectolitici endogeni dell’uva, o di quelli aggiunti dal vinificatore. Per questo motivo i vini, alla fine della fermentazione alcolica, non contengono praticamente più omogalatturonani;
2. le gomme sono i polisaccaridi solubili che si ottengono dopo eliminazione delle pectine (omogalatturonani) per saponificazione e precipitazione o per idrolisi ad opera di pectinasi esogene. Oltre che da acido galatturonico, esse sono costituite da zuccheri neutri, principalmente arabinosio, ramnosio, galattosio e, in misura minore, xilosio, mannosio e glucosio. Le gomme sono state anche denominate polisaccaridi non pectici.
Quest’ultimo termine, tuttavia, non è appropriato. Si tratta, infatti, di sostanze pectiche vere e proprie in quanto tutti i polisaccaridi solubili dell’uva sana sono, nel loro stato originario, costituenti della lamella mediana e della parete primaria cellulosopectica della cellula vegetale e, come tali, sostanze pectiche. In definitiva, le gomme corrispondono ai residui della trasformazione delle sostanze pectiche del mosto, dopo azione delle pectinasi endogene o esogene.
È noto, dai lavori di Usseglio-Tomasset, che le gomme sono una miscela complessa di eteropolisaccaridi che presentano una gamma molto estesa di pesi molecolari (da meno di 10.000 a più di 200,000) e la cui composizione in monomeri è molto variabile.
L’uso di scambiatori di ioni del tipo DEAE Sephadex ha permesso la prima separazione delle gomme in quattro frazioni, comprendenti gomme neutre o osani, costituite soprattutto da arabinosio e galattosio, e gomme acide, composte di acido galatturonico, ramnosio, arabinosio e galattosio. Esse sono tanto più ricche di ramnosio, quanto più sono acide.
È certamente preferibile una terminologia più moderna. I polisaccaridi solubili del mosto sono classificati semplicemente in sostanze pectiche neutre e in sostanze pectiche acide a seconda che esse contengano o no acido galatturonico nella molecola. Il termine «pectina» designa allora l’insieme delle sostanze pectiche acide e non solamente gli omogalatturonani.
Se in una provetta mettiamo una piccola quantità di vino e ne aumentiamo di circa 5 volte il volume con alcol etilico, previa acidificazione con HCl, dopo agitazione osserveremo che il liquido vino-alcol s’intorbida e da lì a poco si separano in forma sempre più netta e vistosa dei fiocchi o filamenti chiari, che lentamente si raccolgono sul fondo della provetta.
Questo sedimento dall’aspetto gelatinoso comprende, per la gran parte, sostanze colloidali di natura glucidica (pectine, gomme, mucillaggini), che rappresentano il complesso colloidale più importante del mosto e del vino. Ora se il precipitato viene, dopo opportuna purificazione, solubilizzato e sottoposto all’esame elettroforetico, si ha la separazione netta di due tronconi: uno caratterizzato da elevata mobilità, l’altro da bassa mobilità.
Pertanto possiamo ravvisare in questo complesso colloidale due gruppi distinti, che non solo si differenziano per comportamento elettroforetico, ma per struttura molecolare e stabilità. Trattasi del gruppo delle pectine o polisaccaridi “acidi” da un lato e del gruppo degli arabani, galattani, ramnani, glucani, ossia di materie genericamente gommose o polisaccaridi “neutri” dall’altro.
A noi sembra perciò opportuno analizzare separatamente composizione e caratteristiche dei colloidi dei due gruppi, anche se in natura vi si trovano normalmente in forme associate, più o meno complesse.
Gruppo delle pectine o polisaccaridi “acidi”
Le pectine, molto diffuse nel regno vegetale, sono delle grosse molecole o macromolecole formate, per condensazione, da catene di un gran numero di molecole di acido d-galatturonico, saldate fra loro da un legame glucosidico (1-4).
I gruppi carbossilici (-COOH) di questo acido risultano parzialmente esterificati dall’alcol metilico (-COO-CH3) e parzialmente liberi, suscettibili questi ultimi di essere salificati (con calcio, magnesio, ecc.). Oltre la metà dei carbossili risultano, in genere, esterificati. È ai carbossili liberi che si deve soprattutto la forte carica negativa della pectina, e pertanto la elevata mobilità elettroforetica.
Il peso molecolare di queste sostanze può variare moltissimo, grosso modo da 20.000 a 300.000 e con esso lo sviluppo e le dimensioni della catena pectica.
La produzione dell’acido galatturonico nei vegetali avviene dal glucosio, in forma di glucosiouridindifosfato, attraverso la formazione dell’acido uridinfosfoglucuronico in seguito all’intervento del nicotamideadenindinucleotide in forma ossidata (NAD+); successivamente le epimerasi trasforma l’acido uridindifosfoglucoronico in acido uridindifosfogalatturonico e quindi si hanno i processi di polimerizzazione con legame glucosidico in 1 —> 4 tra le molecole e separazione dell’uridindifosfato.
Le pectine, dopo precipitazione con alcol, si separano dagli altri colloidi glucidici facendole riprecipitare sotto forma di pectato di calcio, operando opportunamente. Il precipitato di calcio appare, di solito, inscindibilmente legato a componenti di natura glucidica a bassa mobilità, come arabani, galattani, ramnani.
Tale constatazione ha fatto sorgere il dubbio che altre frazioni colloidali potessero partecipare alla struttura stessa della pectina. Si deve a Usseglio-Tomasset e Castino il merito di aver definitivamente dimostrato che il pectato di calcio, dopo un accurato procedimento di purificazione e solubilizzazione, sottoposto all’azione elettroforetica su fibra di vetro, fornisce un componente mobile costituito praticamente da solo acido galatturonico (63,90%).
Pertanto le pectine, anche se posseggono spiccate attitudini all’associazione con altri colloidi, rappresentano una sostanza definita, composta unicamente da acidi galatturonici. A noi è sembrato non del tutto ozioso, enologicamente parlando, l’aver toccato questa particolare questione.
Nell’uva si trovano sostanze pectiche solubili che passano nel mosto, ed altre insolubili (protopectine) annidate particolarmente nel tessuto parenchimatico della buccia.
L’evoluzione dei polisaccaridi totali del mosto nel corso della maturazione dell’uva
In confronto ad altri frutti, l’uva a maturità è relativamente povera in sostanze pectiche. Questi composti costituiscono la parte essenziale delle sottili pareti delle cellule della polpa; le pareti della buccia, più spesse, contengono, oltre alle sostanze pectiche, in quantità più importante, emicellulose e cellulosa. Le variazioni dei tenori in polisaccaridi solubili totali dei mosti di uve sane, nel corso della maturazione attestano l’importanza dei fenomeni di idrolisi delle pareti cellulari durante questo periodo.
In un primo tempo, al momento dell’invaiatura, è solubilizzata la protopectina (pectine insolubili) della lamella mediana con la conseguenza di un arricchimento del mosto in sostanze pectiche solubili, di cui l’acido galatturonico è il maggior componente. In seguito, si aggiunge a questo fenomeno, da una parte la degradazione della parete pectocellulosica con il risultato della solubilizzazione di sostanze pectiche, dall’altra l’idrolisi delle catene di acido galatturonico delle sostanze pectiche acide idrosolubili.
È nel corso di questo secondo periodo che si constata generalmente una diminuzione del tenore in polisaccaridi solubili totali dei mosti e del contributo dell’acido uronico. Si osserva anche che i polisaccaridi solubili totali del Carignan aumentano bruscamente al momento dell’invaiatura e che il tenore in pectine, stimato attraverso la determinazione dell’acido galatturonico, diminuisce verso la fine della maturazione.
In certi casi, tuttavia, per mancanza di attività pectinasica endogena dell’uva, il tenore in sostanze pectiche acide solubili del mosto aumenta durante tutto il corso della maturazione; questa evoluzione si presenta spesso quando la vite subisce marcati stress idrici. L’impiego di pectinasi esogene è allora necessario per ottenere una chiarifica soddisfacente dei mosti bianchi durante lo sfecciamento.
Nel mosto passano frazioni più o meno importanti di pectine; molta influenza hanno, a questo riguardo, il tipo di vitigno, il grado di maturazione dell’uva e l’andamento climatico dell’annata. Se infatti la stagione decorre asciutta e calda si avrà un notevole incremento in sostanze pectiche (e proteiche). Anche la tecnologia di trasformazione (pigiatura, macerazione o meno, trattamenti, temperatura di fermentazione, ecc.) è determinante a questo riguardo. La parte preponderante dei polisaccaridi pectici, in ogni caso, proviene dalla polpa dell’acino.
I tassi di pectine solubili nei mosti freschi possono, infatti, accusare differenze considerevoli, da 100 a 1000 e più mg/litro. A tale proposito vogliamo osservare che fissare dei contenuti medi significativi, non solo in pectine, ma in proteine e colloidi in generale. nei mosti e nei vini, è sempre molto difficile, se non vano, troppo rilevanti essendo le differenze.
Le pectine cedute dall’uva ai mosti soggiacciono, dal momento della pigiatura, a fenomeni di degradazione prevalentemente enzimatica. Trattasi dell’azione di enzimi pectolitici, contenuti naturalmente nel succo d’uva.
Vi è da osservare subito che le pectine, proprio perché colloidi idrofili ad elevata mobilità elettroforetica, risultano molto più sensibili ai processi di idrolisi di quanto non lo siano i colloidi a bassa mobilità (proteine, gomme, destrani, ed in generale i polisaccaridi neutri). Prima però di tracciarne, seppur brevemente, il quadro evolutivo in vinificazione e nei vini, ci sembra non privo di interesse dire qualcosa sui processi di decomposizione pectolitica.
L’influenza delle sostanze pectiche sulle proprietà del vino
Si è attribuito spesso alle sostanze pectiche un ruolo nella formazione del carattere «morbido» (moelleux) e del «grasso» (gras) dei vini. Certamente, quando possiedono queste qualità, i vini contengono quasi sempre quantità importanti di sostanze pectiche, ma non sembra che queste siano direttamente responsabili delle sensazioni percepite.
In effetti, isolate dal vino e aggiunte a soluzioni modello o a vini bianchi (in quantità che vanno fino al g/L), esse non modificano né il «grasso» (gras) né la morbidezza (moelleux). D’altra parte, la viscosità intrinseca di questi composti è bassa, in accordo con la loro struttura piuttosto compatta.
Si ipotizza, tuttavia, che, combinandosi ai composti fenolici (tannini), le sostanze pectiche del vino (polisaccaridi) possono modificarne le proprietà gustative e, in particolare, diminuirne l’astringenza.
Il ruolo dei colloidi glucidici sull’illimpidimento e sulla stabilità dei vini è stato studiato più a fondo; ad esempio, le sostanze pectiche colmatano gli strati filtranti allestiti per la filtrazione dei vini. Questo fenomeno è particolarmente avvertito nel caso della microfiltrazione tangenziale, in quanto il tasso di ritenzione dei colloidi glucidici può superare il 50%. In questo processo, gli AGP (arabinogalattani-proteine) sono molto più fortemente ritenuti delle mannoproteine provenienti dal lievito.
Gli AGP hanno anche un effetto protettore contro la casse proteica dei vini bianchi. Questa azione è, tuttavia, meno efficace di quella delle mannoproteine dei lieviti. I ramnogalatturonani I e II (RG-I e RG-II) sono inibitori di cristallizzazione dei sali tartarici nei vini, fenomeno per il quale gli AGI’ non hanno alcun effetto.
L’inibizione naturale della cristallizzazione dei sali tartarici a bassa temperatura è più marcata nei vini rossi che nei vini bianchi; questa differenza è dovuta, in parte all’azione dei polifenoli, anch’essi inibitori di cristallizzazione, in parte alla presenza di RG-I e di RG-Il contenuti in quantità più importanti nei vini rossi.
Infine, i dimeri di ramnogalatturonani (dRG-II¬B) possono formare complessi di coordinazione con particolari cationi bi e trivalenti, in particolare gli ioni Pb2+. Per tale motivo dall’85 al 95% del piombo determinato nei vini si trova sotto forma di complessi stabili con il dRG-II-B. Si ignora l’incidenza di questi complessi sulla tossicità del piombo nell’organismo.
Degradazione delle Pectine
Attualmente conosciamo quattro enzimi principali, in grado di agire sui legami glucosidici della macromolecola pectica, sì da frantumarne la lunga catena. Due di essi e cioè la “endo-polimetilgalatturonasi” (PMG) e la “endo-poligalatturonasi” (PG) spezzano la grossa molecola in tronconi, in frammenti minori; in questo modo ne viene diminuita la forte viscosità, propria della pectina.
Subentrano quindi altri due enzimi dello stesso tipo, ma “eso” (anzichè “endo”) che operano sulle parti terminali di questi frammenti, mettendo in libertà acidi pectici, acido galatturonico ed alcol metilico. Gli acidi pectici o acidi poligalatturonici vanno intesi come gli ultimi residui della catena pectica completamente privi di gruppi metossilici (-OCH3); l’idrolisi a sua volta dell’acido pectico porta alla formazione di unità di acido d-galatturonico.
Ma affinché ciò avvenga si rende necessario in realtà l’intervento di un quinto enzima, la “pectinesterasi” (PE) o”pectinmetilesterasi”‘. In difetto di questo enzima la disgregrazione della catena a livello degli ultimi componenti non può verificarsi.
Va ricordato che il processo di demolizione pectolitica è favorito dai pH elevati. Più esattamente la massima attività delle poligalatturonasi si ha a pH 4,5 – 4,7; essa è, altresì, sensibile alla temperatura; a 40°C si riduce, secondo Datounaschvjli e coll., già del 40 per cento.
Lo stesso dicasi per la presenza di alcol etilico; infatti la stessa riduzione del 40% di attività si verifica in un vino di 100 d’alcol. Il punto isoelettrico dell’enzima si colloca intorno a pH 3,5 (Turina 1977). Da quanto sopra scaturisce, dal punto di vista tecnologico, un particolare interesse per questi fenomeni, quando fosse possibile ostacolare o impedire nei mosti l’attività della sola PE, al fine di scongiurare formazioni anomale di alcol metilico.
È un enzima che, come gli altri, compare nell’uva in tenori molto variabili. Colpisce in questi processi di degradazione enzimatica, similmente a quanto abbiamo visto per le proteine, la perfetta e complessa concatenazione dei fenomeni. La natura non è acrobata, ma rigorosamente sistematica. Natura saltum non facit!
Nella vinificazione in bianco le pectine, a cominciare dalla pigiatura, subiscono una progressiva diminuzione, ad opera degli enzimi, cui abbiamo appena fatto menzione. Assistiamo, insomma, ad un processo di demetilazione, e pertanto ad una più elevata mobilità elettroforetica delle pectine residue, per il maggior numero di carbossili che si rendono liberi.
Fatto questo che le rendono ancora più instabili.
Alla svinatura resta ben poco del patrimonio pectico iniziale; tanto è vero che dopo qualche mese i vini bianchi ne sono praticamente privi.
Nelle vinificazioni in rosso le cose procedono diversamente, dato che con l’avvio della fermentazione tumultuosa, per la presenza della vinaccia, gran parte degli enzimi pectolitici naturali vengono inattivati. Forse per la carica polifenolossidasica che s’accompagna alla vinaccia.
Sta di fatto che le frazioni pectiche demolite prima della fermentazione tumultuosa vengono solitamente rimpiazzate durante il processo fermentativo, per il continuo passaggio di nuove sostanze pectiche nella massa liquida dalla vinaccia, favorito dalla temperatura e dalla azione indiretta dell’alcol in via di formazione.
Sicché al termine della fermentazione i tassi di sostanze pectiche non appaiono normalmente molto diversi da quelli riscontrati nel pigiato. Soltanto nel vino, dopo separazione delle parti solide ed il primo travaso, si ha una progressiva caduta delle pectine, nonchè degli altri colloidi, anche se, per questi ultimi, in misura più limitata. Dopo un anno di conservazione restano ancora apprezzabili tracce di pectine nel vino rosso (Usseglio-Tomasset).
L’attività dei lieviti, in questo caso, come del resto l’autolisi degli stessi, non sembra avere alcuna influenza nei fenomeni di degradazione delle pectine. I vini parzialmente fermentati (ad es: moscati) sono, di norma, più ricchi in pectine. Di qui la maggior difficoltà a chiarificare e filtrare.
b) Gruppo dei colloidi glucidici a bassa mobilità o polisaccaridi neutri.
Se dopo precipitazione dei colloidi (non azotati) dal mosto, per alcolizzazione e dopo allontanamento delle pectine vogliamo, sul residuo colloidale di natura glucidica caratterizzato da bassa mobilità elettroforetica (polisaccaridi “neutri”), determinare i carboidrati o zuccheri semplici, i cui polimeri (osani) entrano nella composizione, vi troviamo: galattosio, arabinosio, mannosio, xilosio, ramnosio, glucosio, acido galatturonico ed acido glucuronico (Usseglio-Tomasset e Castino). Osserviamo subito che colpisce la presenza minima o in tracce, fra i componenti glucidici, del glucosio, che la vite pur sintetizza in enormi quantità.
Ora ci si domanda: il gruppo colloidale, di cui parliamo, costituisce un unico colloide dalla struttura complessa, oppure trattasi di un insieme, di un’aggregazione, seppur molto intima, di specie colloidali diverse o più semplici? Usseglio-Tomasset e Castino, volendo dare una risposta al quesito, hanno sottoposto il prodotto colloidale ad un frazionamento spinto con l’aiuto dell’elettroforesi su fibra di vetro; la constatazione è stata che detti colloidi tendono a dividersi, seppur imperfettamente, in due frazioni principali.
Una, in particolare, si è dimostrata relativamente più mobile all’influenza del campo elettrico, una seconda più pigra. La prima frazione risulta costituita, in prevalenza, da monomeri riferibili all’acido galatturonico e uronici in genere, nonchè al ramnosio, oltre a piccole quantità di galattosio e arabinosio; la seconda, invece, più ricca in galattosio e arabinosio, più tracce di acido galatturonico. Anche il peso molecolare varia notevolmente, a seconda del contenuto dei diversi glucidi.
Se infine esaminiamo lo stesso residuo colloidale estratto dal vino, anzichè dal mosto, troviamo che presenta delle modificazioni importanti non soltanto quantitative, ma qualitative; i tenori di esso risultano, in generale, più ridotti, mentre aumenta in maniera rilevante il mannosio ed è presente, in modesta misura, anche il glucosio, precursore dei glucani, apporto questo ceduto evidentemente dai lieviti al substrato fermentescibile.
Da quanto sopra dovremmo escludere l’esistenza di una sostanziale omogeneità, a struttura complessa, dei colloidi glucidici a bassa mobilità, come invece pensavano gli svizzeri Búchi e Denel (1954). Secondo gli AA. astigiani trattasi piuttosto di miscuglio o aggregati di più specie colloidali, contraddistinti da bassa mobilità e non sempre facili da idrolizzare. La stessa rilevazione dei pesi molecolari, cui abbiamo appena accennato, confermerebbe tale ipotesi. Quali siano, poi, i legami ed i caratteri strutturali di questi aggregati, nei quali vi si inseriscono, in forme più o meno intime, anche altri composti colloidali come pectine, proteine, sostanze fenoliche condensate, non lo sappiamo con certezza ancora. Proteine ricche di idrossiprolina, alanina, serina, glicina, possono associarsi con legami covalenti a queste macromolecole glucidiche.
E' questa, del resto, una matassa (l’immagine è pertinente!) ancora lungi dall’essere compiutamente sbrogliata, il che lascia a mezz’aria non pochi interrogativi…. Vien fatto rilevare che in questo gruppo colloidale il componente che più condiziona la relativa mobilità elettroforetica delle diverse frazioni è l’acido galatturonico, sempre presente in tenori variabili, anche se talvolta appena percettibili. Se così stanno le cose deve sembrare quanto meno approssimativa o semplicistica la vecchia nomenclatura che classificava, sic et simpliciter, questi colloidi o polisaccaridi “neutri” dei mosti e dei vini come gomme, destrani e mucillagini.
Volendo tuttavia dare un contorno a quest’ultime sostanze potremmo dire, in base alla composizione predominante, che le gomme vanno riferite agli arabani o pentosani, accompagnati da acidi uronici, e i destrani (e mucillagini) a galattani, mannani, glucani, ossia polimeri di esosi. In realtà sono dei polisaccaridi complessi, vale a dire miscugli di polimeri glucidici, non ben definibili e soggetti a modificazioni, come vedremo tra poco parlando di alcune specie di tali colloidi con forti caratteristiche intasanti. I colloidi glucidici a bassa mobilità si trovano nell’uva, assieme alle pectine e proteine; la loro concentrazione tende ad aumentare con la maturazione.
Essi si formano a seguito di intensi processi biochimici. Gli arabani e i pentosani sono normalmente più abbondanti nella polpa dell’acino; i galattani, mannani e glucani predominano nelle uve “botritizzate”. La quantità di questi colloidi, presenti nei mosti freschi, varia enormemente, da 0,1-0,2 a qualche grammo per litro. Ciò dipende molto dal vitigno e dal decorso meteorico: il caldo ed il secco favoriscono la formazione dei colloidi da parte della vite, per cui si ottengono vini difficoltosi da decantare e filtrare. I polisaccaridi neutri sono molto più stabili che non le pectine e proteine. A fine fermentazione, infatti, la degradazione enzimatica e non enzimatica di essi risulta piuttosto modesta; nella vinificazione in rosso si hanno spesso degli incrementi, per fenomeni di cessione da parte della vinaccia, mentre nei vini bianchi, pur provenienti da uve sane, si possono trovare, a seguito del metabolismo dei lieviti nel corso della fermentazione, piccole frazioni di colloidi (b-glucano) ad elevato peso molecolare ed in prevalenza a-mannano.
Occorre per contro rammentare che un forte accumulo di alcol in fermentazione ne favorisce la precipitazione, in particolare di alcune frazioni mucillaginose e più sensibili all’azione coagulante dell’etanolo. Nei vini di annata i processi di idrolisi verso questi colloidi “protettori”, elettroforeticamente pigri, si verificano con estrema lentezza, durante la conservazione invernale, per la bassa temperatura, mentre detti processi, per effetto di enzimi naturali o degli acidi, si svolgono solitamente con più rapidità a partire dalla primavera. Tra i polisaccaridi le frazioni attualmente meglio note e definite sono senza dubbio le sostanze pectiche o pectine, classificate, come visto in precedenza nel gruppo dei polisaccaridi acidi, comprendenti, secondo alcune recenti indagini, un ristretto sottogruppo di pectine cosiddette neutre in quanto sprovviste di molecole di acido galatturonico (Saubnier e coll., 1988). Sappiamo che le pectine sono sostanze di precaria stabilità, che vengono degradate per processi naturali di idrolisi enzimatica o acida durante la fermentazione del mosto o nel caso di vini rossi almeno in larga misura nei primi tempi di conservazione post-fermentativa.
Le pectine infatti non sollevano in generale grossi problemi di natura tecnologica, per quanto riguarda la chiarificazione o la filtrazione delle masse, in particolare dei vini, come vedremo in seguito. Non così invece alcuni polisaccaridi neutri costituiti da catene di molecole o polimeri formati in prevalenza da esosi (mannosio o, in misura assai più ridotta, glucosio) caratterizzati da pesi molecolari ragguardevoli o estremamente elevati (Doubardieu, 1978). Vogliamo riferirci ai mannani e soprattutto ai glucani, colloidi che possono trovarsi in tenori significativi sia nei mosti che nei vini e che provengono da una doppia fonte: dall’uva invasa dalla Botrytis cinerea (ma anche nobile), il cui fungo (ifomicete) li sintetizza in elevate concentrazioni, oppure dal metabolismo dei lieviti durante il processo fermentativo e che per conseguenza vanno ad arricchire il nuovo vino.
Ora il mannano è un colloide in percentuale fortemente predominante, con legami (1-6) in posizione α ( α-mannano ); il suo peso molecolare solitamente non supera 50.000 e le sue micelle si presentano di norma in forma minuta, per cui la presenza, anche cospicua, di a-mannano raramente può procurare seri problemi nelle operazioni di filtrazione o di chiarificazione del mezzo (Villetaz e Amado, 1980).
Il glucano per contro è il polimero glucidico di gran lunga più temuto dai vinicoli; formato da catene di molecole di glucosio, caratterizzate da legami in β (1-3), fornito spesso di ramificazioni laterali in (1-6) con legami di idrogeno.
Il glucano pertanto è costituito da macromolecole di notevole sviluppo, aventi pesi molecolari estremamente elevati, che possono raggiungere e superare il milione. Quest’ultima specie di colloide che si identifica nel β-glucano crea gravissimi ostacoli alla decantazione e chiarificazione, sia spontanea che provocata, nonchè a livello della filtrazione, in particolare stretta o amicrobica sia dei mosti che dei vini.
Ma non basta, pare che le micelle a struttura ramificata di questo colloide esoso tendano ad agglomerarsi tra loro o per associazione con altre forme colloidali (proteine, sostanze fenoliche, ecc.) aggravando ulteriormente e pesantemente l’effetto intasante e “protettore”. Questi agglomerati colloidali avrebbero poi tendenza a flocculare nel tempo. Se ne deduce che tanto più le micelle colloidali direttamente o per forme associative assumono maggiori dimensioni tanto più ridotta ne risulta la loro stabilità.
Diciamo subito che il β-glucano messo in evidenza nelle ricerche degli ultimi anni, rappresenta per il produttore vinicolo un serio ostacolo, un grosso spauracchio, sia dal punto di vista tecnico che economico. Anche se il ricorso ad uno specifico enzima (β-glucanasi) può consentire, come vedremo più avanti, soddisfacenti od ottime soluzioni. Occorre ricordare ancora che mentre l’a-mannano risulta facilmente solubile nel mosto o vino, non altrettanto è il β-glucano, che possiede una limitata solubilità. Anche questo particolare ha i suoi risvolti da un punto di vista tecnologico.
Nell’acino d’uva colpita (in modo non troppo grave) dalla Botrytis cinerea, il colloide glucanico secreto in abbondanza dal fungo si trova localizzato in profondità tra la buccia e la polpa. Tale localizzazione e la non facile solubilizzazione dello stesso suggeriscono di operare una spremitura meccanica dell’uva “botritizzata” nella forma più soffice possibile, onde limitare al massimo il passaggio del polisaccaride nel mosto.
Quando invece la vendemmia si presentasse irrimediabilmente invasa dalla muffa grigia ogni accorgimento del genere non servirebbe a nulla. La seconda fonte, come accennato poc’anzi, della formazione del β-glucano (e dell’α-mannano) è costituita dal lievito (S. cerevisiae) in fase fermentativa, pur con mosti perfettamente sani o quasi. L’attivo metabolismo può indurre la cellula blastomicetica a secernere sia l’α-mannano che, in tenori assai più modesti, il β-glucano.
Trattasi di fenomeni biochimici estremamente complessi ed ancora poco conosciuti, talora controversi, dove sembrano determinanti il ceppo di lievito impiegato, la composizione del mezzo e le condizioni che accompagnano il processo della fermentazione. Tanto più detto processo è attivo e per conseguenza più abbondante la massa cellulare, tanto maggiore sarà la formazione dei citati colloidi glucidici.
Motivo anche questo molto importante per una scelta oculata del tipo di lievito, per condizionare la temperatura di fermentazione, per evitare eccessi di sostanze nutritive, in particolare azoto, per un pH il più basso possibile e via dicendo. Si fa l’ipotesi che questi colloidi sintetizzati dal lievito, formati prevalentemente dai precursori mannosio e glucosio (accompagnati da piccole quantità di proteine) contribuiscano alla costruzione della parete cellulare, composta in buona parte dai due polisaccaridi.
Il β-glucano meno solubile e fornito meno di appendici, avrebbe prevalentemente la funzione di rafforzarne la struttura. Tutto questo può spiegare la circostanza abbastanza frequente secondo la quale i vini arricchitisi di β-glucano e α-mannano risultano, in modo talvolta rilevante, più difficili da filtrare che non i mosti dai quali derivano. Va rammentato, a questo riguardo, che nell’ambito dei polisaccaridi l’effetto intasante (o con termine francese: colmatante) non conta tanto la quantità o la concentrazione degli stessi nel mezzo liquido, quanto la loro struttura, o se vogliamo il corrispettivo valore dei pesi molecolari.
Così, per fare un esempio, colloidi glucidici quali il destrano (o β-glucano), gli arabani, gli arabinogalattani, ecc., anche a concentrazione di 200 mg/l hanno scarsissima influenza nella filtrazione, mentre nelle medesime condizioni operative i mannani (α-mannano) e le pectine mostrano un discreto effetto intasante; diversamente il β-glucano, in particolare di origine botritica, anche a bassissimi tenori (10-20 mg/l) rende, come noto, la filtrazione difficoltosa se non irrisolvibile e comunque antieconomica.
Pertanto non esiste correlazione alcuna tra concentrazione di colloidi totali e filtrabilità dei vini; mentre tale correlazione diventa altamente significativa nei confronti del β-glucano tal quale o assieme all’α-mannano. Concludiamo questa panoramica ricordando che il vino lasciato sulla feccia, al termine del processo fermentativo, tende progressivamente ad arricchirsi di colloidi intasanti per processi di distruzione cellulare o autolisi.
Stabilizzazione dei vini e sostanze colloidali
Ora, dovendo scendere sul terreno concreto della elaborazione e stabilizzazione dei vini, in relazione ai diversi gruppi di sostanze colloidali dianzi trattate (proteine, pectine, polisaccaridi neutri), vedremo di esaminare i possibili interventi sia di natura chimica che chimico-fisica ed enzimatica, alla luce soprattutto delle attuali conoscenze ed orientamenti.
Per il carattere di queste note e per ragioni di spazio, ci limiteremo a pochi accenni per quanto riguarda quelle pratiche enologiche che possiamo definire collaterali, non propriamente specifiche, di tipo tradizionale (addizioni di gomma arabica, carbone vegetale attivo, tannino, chiarificazione, refrigerazione, filtrazioni strette, ecc. ) che possono avere effetti soltanto parziali, quasi sempre modesti o comunque insufficienti nella riduzione dei colloidi totali presenti nel vino. Iniziamo dalle sostanze proteiche. Occorre subito precisare che intendiamo riferirci a quelle frazioni proteiche che possono dare origine a fenomeni di opalescenza o di velatura o avere proprie flocculazioni nel tempo (rottura o casse proteica).
Ne abbiamo, per la verità, già parlato nelle pagine antecedenti alquanto in dettaglio. Trattasi, insomma, di quella frazione del patrimonio proteico dei vini, specialmente bianchi e rosati, definita, in modo assai convenzionale ed approssimativo, come “proteine termolabili” o “termosensibili” oppure con dizione in senso più lato “proteine instabili“. Questo tipo di proteine instabili deve essere neutralizzato entro i limiti di sicurezza, onde mettere il vino al riparo da spiacevoli sorprese.
Il problema relativo alla stabilità proteica può essere affrontato in modi diversi:
1) Impedire alle proteine in soluzione nel vino di precipitare.
2) Eliminarne la presenza mediante opportune operazioni.
Premettiamo subito che quest’ultima soluzione è di gran lunga la più razionale, da un punto di vista tecnologico, e quindi coglieremo lo spunto per allargare, come merita, il discorso.
Anzitutto (1° quesito) quale possibilità abbiamo per impedire la precipitazione dei colloidi proteici, specialmente nei vini bianchi e rosati, ancora abbastanza ricchi in tali sostanze? Ne abbiamo fatto cenno in precedenza.
Si tratta di rinforzare le difese naturali antiproteiche (e non soltanto antiproteiche), mediante i cosiddetti colloidi “protettori”, con adeguate addizioni di gomma arabica.
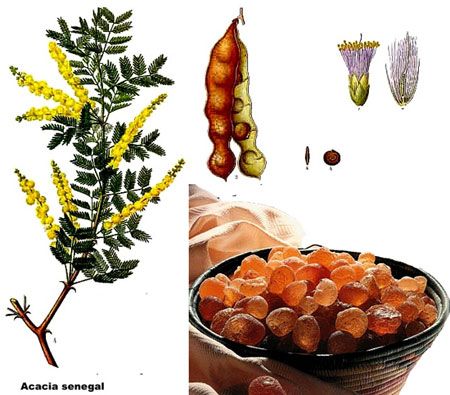
La gomma arabica è un prodotto utilizzato in enologia per le sue proprietà stabilizzanti e di miglioramento delle caratteristiche organolettiche del vino, ottenuto dall’essudato prodotto da Acacia Senegal (detta anche Hashab, Kordofan) e Acacia seyal (Thalk), in commercio si trova in frammenti, in lamine, in soluzione concentrata o in polvere fine di color bianco, tecnicamente pura.
Le proprietà stabilizzanti della gomma arabica derivano dalla sua struttura molecolare: è un composto costituito principalmente da polisaccaridi e per circa il 2% da glicoproteine, in grado di interagire con i colloidi idrofobi presenti nel vino. Questo prodotto è grosso modo analogo ad alcuni polimeri glucidici neutri, in particolare al destrano (o β-glucano). In tal modo ne impedisce l’aggregazione in complessi macromolecolari di notevoli dimensioni, che danno luogo a intorbidamenti e precipitazioni indesiderati, che possono avvenire in presenza di lievi instabilità (proteica, tartarica, casse ferrica, rameica).
L’aggiunta ai vini di gomma arabica è una pratica preconizzata molti anni fa (1933) da Ribéreau-Gayon; viene utilizzata come antidoto nei confronti della “casse” bianca o fosfato ferrica, in quella rameosa ma anche nell’ostacolare l’insolubilizzazione proteica. Dosi 10-30 g/hl. E’ stata a suo tempo inclusa tra le pratiche consentite in enologia dalla CEE (R. 1678/77 e R. 337/79).
La sua capacità di interagire con i tannini presenti nel vino porta anche alla riduzione dell’astringenza e dell’amaro, sensazioni legate alle molecole più reattive; il miglioramento a livello gustativo è completato dall’apporto di sensazioni gradevoli di maggior volume, morbidezza, vellutato, che sono direttamente correlate al peso molecolare della gomma arabica e che a sua volta dipende dall’origine botanica e dal grado di idrolisi cui la molecola è sottoposta.
Le gomme arabiche dotate di maggiori capacità stabilizzanti e di miglioramento organolettico, sono quelle ottenute da Acacia Senegal, che produce gomme di maggiori dimensioni molecolari.
La loro aggiunta al vino ne aumenta tuttavia in modo più marcato la viscosità e ciò porta a un maggior intasamento delle cartucce filtranti. L’aumento della filtrabilità si ottiene mediante l’impiego di gomme Seyal idrolizzate per trattamento con acidi, che ne riducono la viscosità grazie alla rottura della molecola in frazioni di dimensioni inferiori, come schematizzato in figura.
Gli effetti della gomma arabica risultano massimizzati quando essa è utilizzata nelle fasi finali che precedono l’imbottigliamento, consentendo di stabilizzare nel tempo le caratteristiche chimico-fisiche del vino durante la conservazione in bottiglia, oltre che rivelarsi un valido trattamento di rifinitura dei caratteri organolettici.
L’aggiunta di gomma arabica non facilmente solubile andrebbe fatta nei vini prima dell’ultima filtrazione: questo trattamento renderebbe però difficoltosa la filtrazione, mentre una parte non trascurabile del colloide addizionato verrebbe trattenuta dagli strati filtranti, in particolare a base di farine fossili, riducendone, in tal modo, l’effetto protettivo. Sarebbe perciò consigliabile l’introduzione diretta del colloide nel vino già pronto per l’imbottigliamento, come del resto sosteneva anche Ribéreau-Gayon, ma una siffatta soluzione comporterebbe a sua volta altri inconvenienti.
Anzitutto il rischio di lasciare nel vino delle impurità che accompagnano sovente il prodotto commerciale, oppure di dover sottoporre preventivamente la soluzione gommosa ad una non facile filtrazione la più stretta possibile, operando a temperatura piuttosto elevata. Superate comunque anche queste difficoltà resterebbe il fatto, tecnicamente inevitabile, di uno scadimento, sia pure appena percettibile, del grado di brillantezza, di viva naturale luminosità del vino trattato, specialmente se bianco.
Conseguenza questa d’un pur remoto fenomeno di Tyndall, che si instaura a seguito di tale intervento. La vasta gamma di preparati commerciali di gomme arabiche consente una notevole praticità e versatilità d’impiego e permette la scelta del prodotto migliore in base agli effetti ricercati e alla combinazione degli stessi con esigenze di tipo impiantistico.
Pertanto, qualora si voglia ottenere un marcato effetto organolettico in vini da non microfiltrare oppure vi sia la possibilità di aggiungere il prodotto in post filtrazione, la scelta sarà indirizzata verso gomme arabiche con un minor grado di idrolisi, mentre se vi è la necessità di microfiltrare il vino o non sia possibile il dosaggio a valle delle cartucce, ci si orienterà verso gomme arabiche più idrolizzate che meno influenzano la filtrabilità del vino.
La gomma arabica può essere addizionata anche ai vini rossi (20-30 g/hl). Giacomini (1979) ne propone il ricorso altresì per la stabilizzazione della sostanza colorante e per un certo effetto anticremore, in abbinamento all’acido metatartarico. In commercio la gomma arabica si trova solitamente in soluzione intorno al 25%, prefiltrata e pronta per l’impiego addizionata di SO2 quale stabilizzante, e di acido citrico.
La …. chirurgia vale infatti anche e sommamente nella moderna tecnica enologica, più che soluzioni di puntellamento, spesso precarie. L’eliminazione, entro limiti di sicurezza, di ogni agente direttamente responsabile della perturbazione della limpidezza dovrebbe, quasi sempre, rappresentare la soluzione tecnicamente da preferire. Così la eliminazione delle frazioni proteiche instabili presenti nel vino. Ma come raggiungere tale risultato?
Ricordiamoci, anzitutto, che il vino è un prodotto naturale, apprezzato per le sue inimitabili caratteristiche di profumo e di gusto, quindi tutte le operazioni che noi compiamo su di esso, a qualsiasi fine, devono rispettarne al massimo l’integrità.
Di qui l’importanza di ricorrere, di volta in volta, ai trattamenti non solo tecnicamente, ma enologicamente più consoni. Ora le sostanze proteiche presenti in un vino possono, di massima, essere eliminate mediante: tannino, riscaldamento, alcolizzazione, enzimi proteolitici, bentonite.
Ci soffermeremo soprattutto in dettaglio sulla bentonite per la complessa funzione che riveste in questo caso particolare. Il tannino è pur esso un fattore naturale della massima importanza, tale da influenzare in maniera determinante il contenuto proteico nei vini.
I tannini derivano dalla polimerizzazione per condensazione di molecole fenoliche elementari, cioè da flavani, come i leucoantociani e le catechine. I loro pesi molecolari variano, a seconda del numero di questi monomeri, da 500 a 3000 circa, mentre il punto isoelettrico di essi è intorno a pH 2,1.
I tannini, perciò, posseggono carica elettronegativa vale a dire opposta a quella delle proteine.
Le proprietà dei tannini dipendono dalla natura delle molecole semplici che li compongono, dai loro reciproci legami e dal loro peso molecolare, cioè dal grado di polimerizzazione. Rammentiamo ancora che i tannini d’uva presenti nei mosti e nei vini, detti anche enotannini, sono tannini condensati o pirocatechici, non idrolizzabili, diversi dai tannini di galla o gallo-tannini o pirogallici (i tannini in commercio), soggetti a scomposizione idrolitica per azione enzimatica (“tannasi”) o di acidi forti.
A tutti è notorio il fatto della combinazione tannino¬proteine, che viene da tempo immemorabile sfruttato nella pratica di chiarificazione dei vini (e mosti), con prodotti come gelatina, ittiocolla, albumina di sangue e d’uovo, caseina lattica. Chiarificazioni provocate che, in ogni caso, inducono modestissime riduzioni di proteine naturali del vino, tendenzialmente instabili.
Va detto subito che non si tratta di una vera e propria reazione chimica secondo rapporti di combinazione definiti e costanti, ma piuttosto di processi di adsorbimento reciproco o di intima aggregazione, cui intervengono svariati fattori fisici e chimici, con formazione di un complesso tanno-proteico o meglio polifenoli-coproteico, che assume carica elettronegativa, insolubilizza facilmente e precipita in fiocchi al fondo.
Il meccanismo che ingenera la flocculazione reciproca fra tannini e proteine, aventi cariche opposte, siano esse proteine naturali che addizionate, è stato già schematizzato da noi quando ci siamo soffermati su alcuni tipici comportamenti dei colloidi proteici.
Si è visto che l’idrogeno delle funzioni fenoliche dei tannini (ed altri polifenoli) si lega al gruppo peptidico delle proteine, disidratandole e quindi causandone la precipitazione. Pertanto i tannini sono i principali regolatori della presenza, più o meno importante, delle sostanze proteiche naturali nei mosti e nei vini.
Ciò spiega perché i vini bianchi o i vini derivati da vinificazioni in bianco e quindi poverissimi in sostanze tanniche (50-200 mg/1), risultano al contrario nettamente più forniti di proteine; raramente i vini rossi, a contenuto rimarchevole di materie tanniche (2-5 g/1), vanno incontro a fenomeni di intorbidamento proteico. Ne deriva che l’aggiunta artificiale di tannino ai vini bianchi, in dosi compatibili con le caratteristiche di gusto, agevola l’eliminazione delle proteine naturali, ma occorrono per questo molto tempo e condizioni del mezzo sufficientemente favorevoli.
Non pensiamo però che questa pratica sia, oggi, seguita da qualcuno; detta aggiunta, caso mai, ha altri intendimenti, come quello di conferire talvolta una maggiore robustezza organolettica al vino, ma soprattutto per consentire un più completo e rapido andamento delle chiarificazioni proteiche (gelatina, albumina, caseina), capaci di trascinare, come sappiamo, anche piccole frazioni di proteine naturali del vino. Anche la conservazione dei vini bianchi in fustame favorisce indubbiamente l’eliminazione dei colloidi azotati, grazie al lento passaggio nel vino di tannini dal legno delle doghe.
Fattori che agiscono sulla combinazione tanno-proteica
È importante chiarire, a questo punto, che la precipitazione delle proteine per interazione con i tannini non è mai completa, dato che si determina, anche in questo caso, un equilibrio tra i due, in stato di soluzione o dispersione limpida nel mezzo-vino; infatti nuove aggiunte dell’uno o dell’altro provocano facilmente ulteriori flocculazioni. Si aggiunga ancora che il contenuto, l’entità della presenza nei vini dell’una come dell’altra sostanza, a parità di condizioni del mezzo (pH, temperatura, ecc. ) non è tutto; conta molto, in questo rapporto di combinazione, anche la natura dei tannini, cioè il loro grado di polimerizzazione e le molecole elementari che li compongono, come, d’altra parte, la natura delle proteine, formate da amminoacidi diversi e in numero variabile.
Detto questo dobbiamo esaminare, seppur brevemente, il ruolo importantissimo che alcuni fattori, come la temperatura, il pH, il ferro ed altri cationi o elettroliti, i colloidi “protettori”, svolgono nell’ambito della formazione di tali complessi tanno-proteici, sia che il processo avvenga naturalmente, spontaneamente in seno alle masse (mosto, vino), sia per via artificiale, cioè con la pratica delle chiarificazioni a base di sostanze proteiche.
Aggiungiamo subito che le attività e le influenze di questi fattori, nelle condizioni reali in cui si svolgono i fenomeni, non si manifestano singolarmente, le une distinte dalle altre, ma si sovrappongono, si confondono, si esaltano o si contrastano reciprocamente ed in vario modo. Così le basse temperature favoriscono, in misura notevole, la precipitazione proteica nei mosti e nei vini bianchi, in quanto basta la presenza di piccole quantità di tannini per precipitare molta proteina. E viceversa. Infatti quando la temperatura delle masse risulta elevata (25-30°C), le proteine precipitano in modo stentato e parzialmente, anche a fronte di un forte contenuto tannico. Questo diverso comportamento si spiega, almeno in parte, con il minimo effetto anti-coagulante esercitato dai colloidi “protettori” alle basse temperature, dato che in tali condizioni le materie mucillaginose e le gomme “impigriscono” notevolmente, limitando con ciò la loro capacità di avvolgere, come in una guaina protettiva, le macromolecole proteiche o tanno-proteiche.
Al contrario, il ferro allo stato libero si ossida più facilmente alle basse o modeste temperature, passando dallo stato ferroso a quello ferrico, e pertanto è in grado di esercitare il suo ruolo di potente catalizzatore oltre che di catione positivo. Sono sufficienti differenze in più o in meno di 1 mg/l di Fe3+ per avere effetti sensibilmente maggiori o minori nella precipitazione proteica o tanno-proteica o nella classica chiarificazione provocata. Inversamente quando la temperatura superasse, grosso modo, i 25°C, il ferro viene rapidamente ridotto, perdendo gran parte della sua specifica attitudine catalizzante e neutralizzante; nelle stesse condizioni di temperatura invece gli eventi protettivi colloidali si accentuano in maniera sensibile.
Altro fattore determinante è il pH.
A pH bassi o molto bassi, cioè con vini fortemente acidi, le proteine naturali risentono meno della presenza del tannino: la loro combinazione, in tali condizioni, diventa più difficile e lenta.
La spiegazione di questo fenomeno risiede nel fatto che i tannini, il cui punto isoelettrico è intorno a pH 2,3-2,5, contengono dei gruppi fenolici debolmente acidi (pK dell’ordine di 10-10) e che a pH bassi (forte concentrazione di ioni H+) sono pochissimo dissociati; ne deriva che, per la legge di azione di massa, è presente in quantità preponderante la forma indissociata, per cui la reattività dei tannini risulta minima. Di qui la difficoltà per il tannino di “legare” con le proteine, e nel caso della chiarificazione provocata, con la gelatina addizionata.
Lo stesso fenomeno si ha, per converso, quando il pH del vino (o mosto) è eccessivamente alto (oltre 3,8-4), cioè quando si avvicina al punto isoelettrico delle proteine o meglio della frazione proteica più importante che è intorno a pH 4,6-4,7. Pertanto la zona dei pH più propizia per la combinazione, sia naturale che provocata, delle proteine con i tannini sembra essere, grosso modo, quella compresa tra 3,4 e 3,8.
Per contro ai bassi pH il ferro trivalente, che come abbiamo ricordato esercita una forte influenza catalizzatrice, è in gran parte allo stato libero, dissociato, quindi attivo, mentre ai pH elevati è, in forte misura, complessato e pertanto incapace di agire. Come si vede il gioco in questi rapporti tanno-proteici, è estremamente complesso e difficile da chiarire in ogni suo aspetto. Abbiamo già visto come i tannini o più in generale i polifenoli agiscono sulle proteine denaturandole, cioè trasformandole da emulsoidi a sospensoidi.
Questo fatto le rende sensibili agli elettroliti o più propriamente ai cationi come K+, Na+, Ca++ Al+++ Fe+++, la cui maggiore o minore azione è legata alla valenza e al peso atomico. Molto più efficaci a questo proposito, infatti, si dimostrano i cationi plurivalenti.
Pertanto una sufficiente carica salina (ceneri) presente nei mosti e nei vini può determinarne o facilitarne la flocculazione.
Chiarificanti Proteici
Detto questo vediamo di soffermarci un momento sul diverso comportamento dei chiarificanti proteici più impiegati, vale a dire gelatine, albumine, caseine, gelatina-sol di silice, quali importanti fattori tecnologici di stabilizzazione, come abbiamo avuto occasione di parlarne nel precedente capitolo, ma soprattutto nelle operazioni di chiarificazione provocata. Sulle gelatine ci siamo qua e là intrattenuti assimilandone il comportamento a quello delle proteine naturali dei vini. Pertanto non abbiamo granché altro da aggiungere. Riassumendo possiamo dire che le gelatine si mostrano soprattutto sensibili a due fattori: il pH e la temperatura.
Il ricorso, infatti, a questo chiarificante è sconsigliabile quando il pH risulti basso o molto basso (2,8-3,2); anche se in nostre esperienze le differenze di comportamento o di tempi nella chiarificazione con gelatina, a pH diversi, non sembrano così evidenti o estreme come viene fatto di pensare. Per quanto riguarda la temperatura abbiamo già visto che soltanto a freddo o comunque a temperature non superiori a 18-20°C è possibile ottenere buoni o discreti risultati impiegando la gelatina. A 25-30°C o più la chiarificazione avviene spesso con difficoltà, in particolare quando il mezzo non sia ricco di tannino.
Questo vuol dire che nei flocculati la percentuale di tannini rispetto a quella del proteide sale progressivamente man mano che la temperatura aumenta e viceversa. Pertanto, anche nel caso dei trattamenti con gelatina, vale la regola di combinazione: – poco tannino e molta gelatina a bassa temperatura; – molto tannino e poca gelatina ad alta temperatura. Altra importante annotazione: i tannini o polifenoli dei mosti e dei vini reagiscono verso la gelatina addizionata in modo diverso anche in relazione al loro grado di polimerizzazione e natura dei monomeri che li compongono. Così trattando vini rossi diversi, aventi lo stesso contenuto totale in polifenoli, stessi pH e temperatura, con la medesima dose di gelatina, la quantità di tannini o polifenoli asportati può risultare diversissima e lo stesso dicasi per quanto riguarda gli effetti chiarificanti.
A cagione appunto del differente stato di polimerizzazione e composizione delle sostanze tanniche (Margheri). Lo stesso discorso vale anche per la gelatina impiegata nel trattamento, il cui comportamento nei confronti dei tannini del vino (o mosti) può variare notevolmente a seconda della qualità della stessa, cioè della sua composizione in amminoacidi, del peso molecolare e dei metodi di preparazione industriale. Migliori risultati si possono, di norma, ottenere con il trattamento combinato sol di silice + gelatina nella chiarificazione dei mosti o vini.
Viene nettamente accentuato, in questo modo, l’effetto deproteinizzante vero e proprio, nonché depauperante nei riguardi dei polisaccaridi neutri (fino al 15-25%), oltre a realizzare un processo di chiarificazione più sollecito e marcato. Anche perché tale intervento combinato risente meno l’influenza, rispetto alla sola gelatina, delle condizioni operative (temperatura, pH, colloidi protettori, ecc.).
L’albumina di sangue o d’uovo e la caseina lattica o il caseinato potassico risentono molto meno le variazioni di temperatura; è quindi opportuno fare ricorso a questi due chiarificanti proteici in condizioni di temperatura piuttosto elevata delle masse da trattare. A pH molto bassi si preferisce la caseina o il caseinato, tenuto conto che tali sostanze flocculano per effetto dell’ambiente acido, anche se (e questo è un particolare assai importante da un punto di vista tecnologico) il mosto e il vino devono, in ogni caso, essere sufficientemente provvisti di tannini, onde conseguire anche un buon effetto chiarificante. In altri termini nel caso della caseina possiamo dire che l’acidità provoca l’immediata coagulazione, ma soltanto il tannino, trascinato anch’esso nel meccanismo, consente una flocculazione tale da assicurare un regolare e soddisfacente processo chiarificante. Ai pH molto elevati sembra più idoneo, invece, il trattamento mediante albumina, essendo quest’ultima meno sensibile ai colloidi protettori e all’acidità.
Approfondimento: Il Collaggio dei Vini
Surcollaggio
È questo un fenomeno non infrequente che si appalesa in vini bianchi e talvolta anche rosati a seguito di chiarificazioni soprattutto eseguite con gelatina. Quando, cioè, rimangono in stato di soluzione o sospensione colloidale frazioni più o meno importanti del proteide addizionato, sia per eccesso di dosi in rapporto alla presenza di tannini, sia per il concorso di altri fattori (cui abbiamo fatto cenno) come basso pH, eccessiva temperatura, forte contenuto in colloidi protettori, carenza di ceneri, oltre ad eventuali condizioni più o meno anomale del mezzo, quali stato di alterazione microbica, soverchie disacidificazioni, e via dicendo.
Le chiarificazioni con albumina, sia di sangue che d’uovo, in polvere, in dosi di 10-25 g/hl, predispongono assai meno i mosti e i vini ai rischi di surcollaggio, rispetto a quelle eseguite con gelatina. Il ricorso alla caseina (5-20 g/hl, di norma), anche in dosi massicce (esempio 50-100 g) non dà luogo praticamente a inconvenienti di sorta, cosa del resto comprensibile quando si consideri che la coagulazione del proteide, in questo caso, è provocata dalla reazione acida del mezzo.
Ora, uno stato esistente di surcollaggio, anche molto lieve, se può rappresentare un … incidente nella elaborazione o conservazione in cantina delle masse, diventa un incombente gravissimo pericolo di intorbidamenti o di opalescenze, più o meno accentuate (a seguito di tardive ed anche impercettibili modificazioni biochimico-fisiche del mezzo), nel caso di vini confezionati o pronti per il consumo.
Quali i possibili interventi contro i pericoli del surcollaggio?
Allo stato attuale della tecnica enologica c’è un rimedio, che vogliamo definire unico e sovrano: la bentonite. Ma su questo importante prodotto ci intratterremo un po’ più avanti.
Coagulazione per riscaldamento
Passando ora ad esaminare gli effetti del riscaldamento (pastorizzazione) sulla coagulazione delle proteine termolabili, naturalmente presenti nei mosti e nei vini bianchi e rosati, l’argomento tannino torna in primo piano, dato il ruolo che vi gioca anche in tale circostanza. In altre parole il fenomeno, in questo caso, si complica non poco con l’intervento triangolare del calore, dei tannini o polifenoli in genere e delle proteine del vino.
A cui si aggiunge l’influenza, più o meno determinante, del pH, degli elettroliti, dei colloidi “protettori” o polisaccaridi del mezzo. Così, ad esempio, anche con il riscaldamento la deproteinizzazione è meno efficace ai pH bassi. Sappiamo che il riscaldamento di un vino (o mosto) a 75-80°C, per pochi minuti, provoca sicuramente la precipitazone dei colloidi proteici “termolabili” eventualmente presenti.
Questa caduta (flocculazione) per vini di normale composizione avviene solitamente in fase di raffreddamento se il riscaldamento è effettuato in modo rapido (in pochi minuti o con la “flash-pastorizzazione”); durante il raggiungimento delle massime temperature se al contrario il riscaldamento procede con molta lentezza. Da queste osservazioni si deduce che la coagulazione delle proteine non è conseguenza diretta del riscaldamento, ma è un fenomeno successivo.
Il riscaldamento infatti solubilizza maggiormente il colloide proteico, presente in un vino (o mosto), ma nello stesso tempo provoca la progressiva disidratazione della macromolecola dello stesso; questo fatto determinante permette anzitutto al tannino di legarsi facilmente al proteide denaturato; in secondo luogo perde la caratteristica di emulsoide stabile per assumere, come abbiamo più volte ricordato, quella di sospensoide, eppertanto sensibile agli elettroliti. Nel tempo stesso le molecole polifenoliche (tannini), per effetto del calore e per la rapida riduzione dell’ossigeno, in stato di solubilità o già in forma attiva (RO2) nel vino, polimerizzano ulteriormente favorendone di solito l’aggregazione con le proteine, più o meno denaturate, e di conseguenza la flocculazione reciproca.
Quando, invece, un vino bianco sia molto povero in tannino e venga anch’esso pastorizzato fino a 75-80°C, il fenomeno di coagulazione albuminoidea tende a verificarsi a prodotto sufficientemente raffreddato, dato che come sappiamo soltanto in queste condizioni minimi tenori di tannino possono combinarsi con la proteina. Sempre che naturalmente non intervenga in anticipo ed in maniera determinante l’azione dell’elettrolita o altre influenze concomitanti.
Pertanto anche il raffreddamento di un vino, al limite del congelamento, può consentire forme d’addensamento e coagulazione proteica, sia per effetto fisico della bassa temperatura sulla macromolecola, sia per la minima influenza dei colloidi protettori e la più vivace azione catalizzante del ferro, in stato prevalentemente ossidato. Una filtrazione stretta, in tali condizioni, permette vantaggiosamente di allontanare buona parte delle sostanze proteiche, presenti nel vino bianco o rosato.
Occorre precisare che temperature inferiori a 70-75°C, in tempi piuttosto brevi, non consentono normalmente una sufficiente garanzia di stabilità proteica quando vengano trattati a caldo vini bianchi, a povero contenuto tannico. In questi casi può essere determinante o quanto meno opportuna una certa aggiunta di tannino alla massa, prima dell’intervento termico.
La pastorizzazione inoltre, com’è risaputo, accentua, in seno alla massa trattata, l’effetto protettivo, anticoagulante e anticristallizzante, come se venisse addizionata della gomma arabica o dell’acido metatartarico. È questo un fenomeno colloidale di indubbio interesse pratico, quanto inesplicabile ancora; probabilmente, a causa del riscaldamento, si ha un processo indotto di ingrossamento, per associazione o condensazione, di alcune frazioni pectiche, mucillaginose, polifenoliche e fors’anche metatartariche.
Questo fatto rappresenta un altro importante motivo che consiglia il raffreddamento, portato al più basso livello possibile, delle masse dopo l’operazione a caldo, in considerazione, appunto, della ridotta azione protettiva esercitata a freddo da tali sostanze.
L’alcolizzazione dei vini, ossia una forte aggiunta di alcol etilico, è una pratica permessa soltanto nella preparazione di alcuni vini speciali come il Vermouth. L’alcol, avendo un energico potere disidratante, agevola oltre modo la flocculazione delle sostanze albuminoidee eventualmente presenti nel vino “base”, sottoposto all’alcolizzazione. Lo stesso fenomeno può verificarsi, anche se in maniera più lenta ed incompleta, nei vini bianchi e rosati di modesta gradazione, quando vengano “tagliati” con vino molto alcolico.
Enzimi proteolitici o proteasi
Nell’industria birraria si fa spesso ricorso ad enzimi proteolitici o proteasi, in grado di “digerire” le proteine idrolizzandole, allo scopo di evitare possibili intorbidamenti di natura proteica. Nel settore enologico, detto enzima non è stato ancora ammesso dalla CEE. Noi stessi, oltre una trentina di anni fa, conducemmo una serie di prove con enzimi, del tipo pepsina, sui moscati ed altri vini bianchi, freschi di fermentazione, nell’intento di soppiantare il trattamento bentonitico, ma il tentativo non fu incoraggiante. Anche Tarantola, qualche anno dopo, sperimentò in vini bianchi l’impiego della pepsina, nelle dosi di 100 mg/1, sola ed associata ad enzimi pectolitici.
La constatazione fu che soltanto una frazione delle proteine presenti veniva degradata, insufficiente comunque ad assicurare una perfetta stabilità del prodotto.
Più recentemente Cordonnier e Dugal misero assai bene in evidenza l’azione delle proteasi (o peptidasi), naturalmente presenti nell’uva. Questi enzimi (proteolitici) esplicano la loro attività ottimale, nella idrolisi delle proteine, a pH molto bassi (intorno a 2) e a temperature di 50-55″C.
Al pH dei mosti (2,9-3,2) e alle normali temperature di fermentazione l’attività di tali enzimi può essere valutata intorno al 40-50 per cento o poco più. Le proteasi sono estremamente resistenti al calore: secondo gli autori francesi, a temperature di 80-90″C per una mezz’ora con mosto a pH 3,15, l’enzima non viene completamente distrutto.
La SO2, in dosi modeste, ha effetto attivante sulle proteasi, in modo più accentuato nei mosti sani, meno in quelli botritizzati. L’alcol invece sembra deprimerne fortemente l’attività. Nelle vinificazioni in rosso questi enzimi risentono non poco della presenza dei tannini e dei polifenoli in genere. Molti altri autori s’interessarono, in particolare negli ultimi vent’anni, a questo problema non privo, tecnicamente parlando, di una certa suggestione. L’enzima proteolitico addizionato ai mosti o ai vini bianchi determina, tutto sommato, una parziale ed insufficiente degradazione delle proteine (mediamente 30-40 per cento).
Ne deriva che il trattamento con la proteasi acida può solo favorire, non assicurare, la perfetta stabilizzazione proteica dei vini (Monca e coll., 1989), nonostante gli sforzi effettuati nel corso di molti anni per raggiungere lo scopo. L’enzima viene estratto da alcuni funghi, come l’Aspergillus: esso scinde i legami peptidici (CO-NH) della macromolecola.
Un fatto importante, messo in evidenza abbastanza recentemente, riguarda l’attività proteasica dei lieviti, quali eso-produttori dell’enzima, specialmente nella fase finale della fermentazione alcolica, quando più forte si manifesta la carenza azotata, in special modo di amminoacidi. Un processo legato soprattutto al tipo di lievito, più o meno dotato di caratteristiche proteolitiche (S. cerevisiae). Tutto questo contribuisce, inoltre, allo sviluppo di batteri malolattici per la disponibilità di forme azotate semplici presenti nel nuovo vino (Feuillat, 1984).
Voci del glossario
Documenti allegati
collaggiovini
PDFPDFcollaggiovini377 KBScarica documentogommaarabicavalidoaiuto
PDFPDFgommaarabicavalidoaiuto133 KBScarica documento